초파리 뇌 심층 해설 ② — 배선도에서 시간에 따라 작동하는 모델로
자료 확인: 2026년 9월 16일
초파리의 연결 지도를 파일로 받았다고 해서 그 파일이 저절로 생각하거나 움직이지는 않습니다. 지도에는 연결 구조가 들어 있고, 시뮬레이션에는 그 구조 위에서 상태가 시간에 따라 변하는 규칙이 필요합니다. 이 차이를 이해하면 ‘뇌를 컴퓨터에서 실행했다’는 뉴스가 어떤 성취를 가리키는지 훨씬 정확하게 읽을 수 있습니다.
이번 글은 연결 지도에 제약을 받은 신경망 모델을 설명합니다. 수식과 작은 수치 예시는 일반적인 계산신경과학 원리를 풀어쓴 자체 예시입니다. 특정 연구의 코드를 그대로 재현하거나, 초파리 뇌의 모든 생물학적 성질을 구현했다는 뜻은 아닙니다.
1. 출발점: 구조와 뉴런의 작동 규칙을 결합하기
2024년 Philip Shiu와 공동 연구진은 Nature에 초파리 뇌의 연결과 추정 신경전달물질 정보를 이용한 누설 적분 발화(LIF) 모델을 발표했습니다. 먹이 섭취와 더듬이 청소에 관련된 감각–운동 경로를 대상으로 예측을 만들고, 그중 여러 예측을 광유전학과 행동 실험 등으로 검증했습니다. 이것은 모든 행동이나 의식을 복제했다는 결과가 아니라, 구조에 기반한 모델이 검증 가능한 회로 가설을 낼 수 있음을 보여준 연구입니다. [1]
모델을 만드는 질문은 네 가지로 나눌 수 있습니다. 첫째, 어떤 뉴런끼리 연결할 것인가. 둘째, 개별 뉴런의 내부 상태를 무엇으로 표현할 것인가. 셋째, 한 뉴런의 출력이 다른 뉴런에 얼마나, 얼마나 늦게 전달되는가. 넷째, 모델에 어떤 감각 입력을 주고 어떤 출력을 관찰할 것인가. 커넥톰은 첫 질문에 강한 제약을 주지만 나머지 질문까지 자동으로 끝내지는 않습니다.
2. LIF 뉴런: 물이 새는 양동이에 입력을 붓는 비유
LIF는 leaky integrate-and-fire의 약자입니다. 입력을 적분하듯 누적하고, 시간이 흐르면 일부가 새어 나가며, 문턱을 넘으면 스파이크를 발생시킵니다. 물이 새는 양동이에 물을 붓다가 수위가 기준선을 넘으면 신호를 내보내고 수위를 낮추는 모습을 떠올릴 수 있습니다. 실제 세포막과 이온 채널은 훨씬 복잡하지만, 이 비유는 누설·누적·발화·리셋이라는 계산 구조를 보여줍니다.
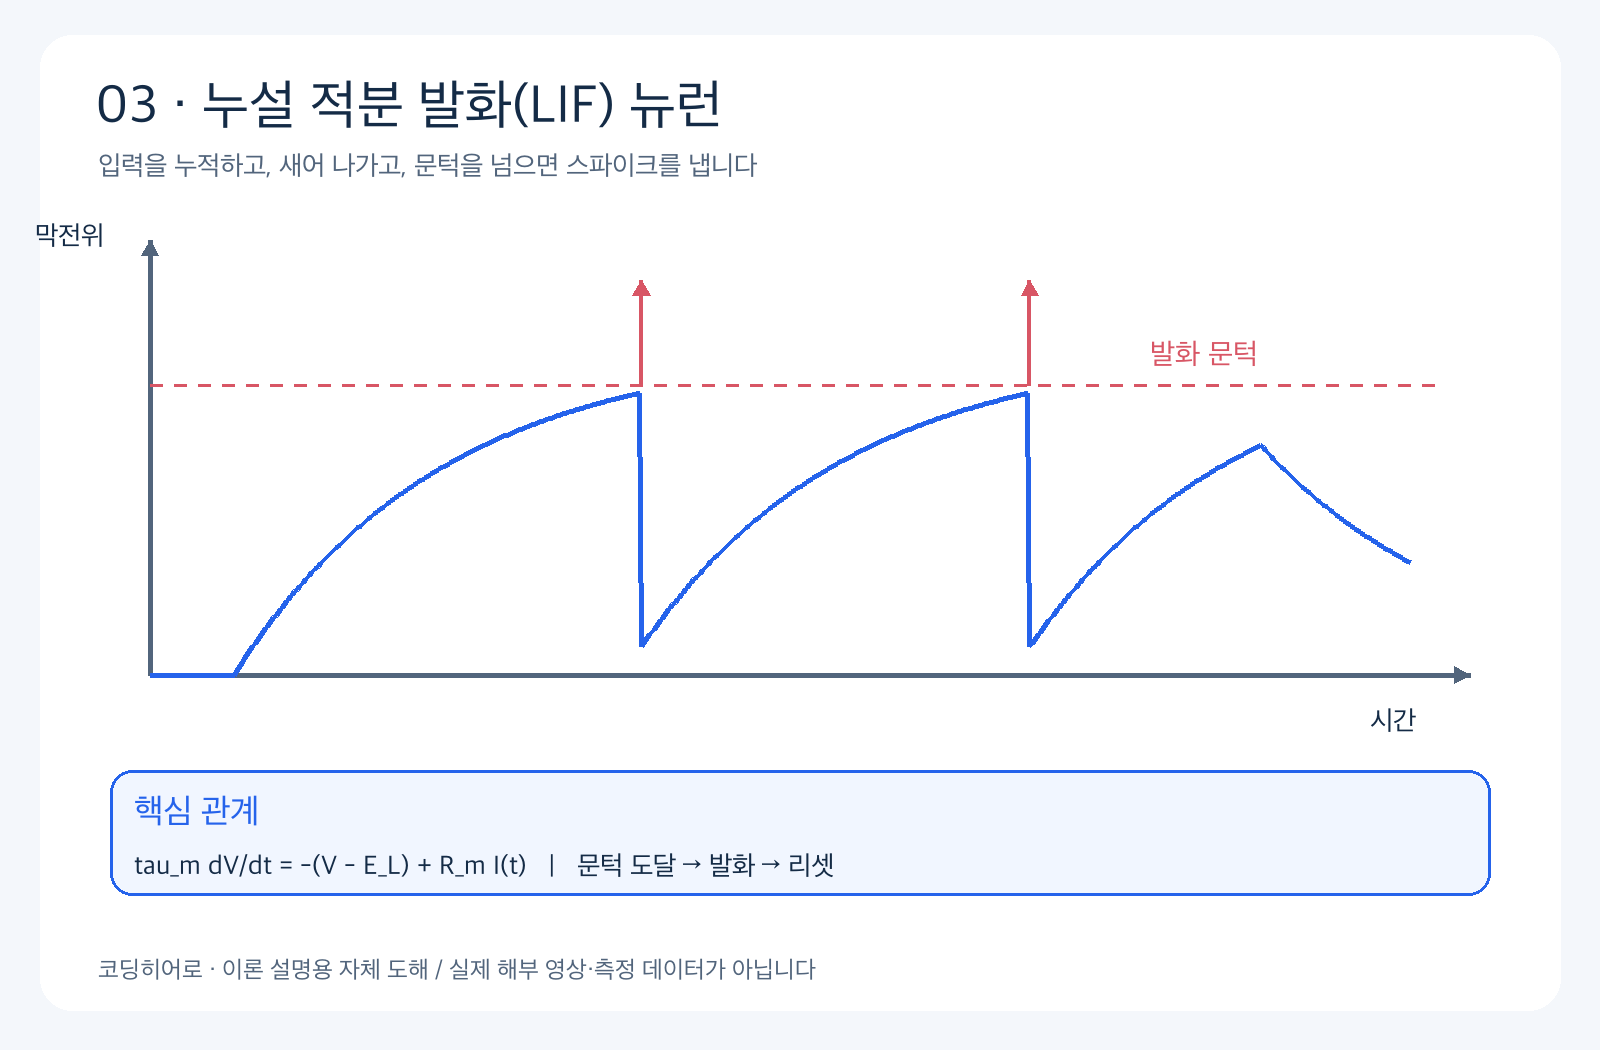
그림 1. 설명용 LIF 곡선. 실험으로 측정한 막전위가 아니며, 상대적인 누적·누설·리셋의 관계를 나타냅니다.
대표적인 전류 기반 표현은 다음과 같습니다.
tau_m × dV/dt = -(V - E_L) + R_m × I(t)
V가 V_th 이상이면 스파이크를 기록하고 V_reset으로 이동
V는 막전위, EL은 누설에 따른 기준 전위, τm은 막 시간상수, Rm은 막 저항, I(t)는 시간에 따른 입력 전류입니다. 좌변은 전위가 얼마나 빠르게 변하는지 나타냅니다. 우변 첫 항은 전위를 기준으로 되돌리고, 둘째 항은 외부 및 다른 뉴런의 입력이 전위를 움직이게 합니다. 실제 구현에서는 발화 직후 다시 발화하기 어려운 불응기도 넣을 수 있습니다.
입력이 사라졌을 때 이 식의 해는 V(t)=EL+[V(0)−EL]exp(−t/τm)입니다. 즉 기준과의 차이가 지수적으로 줄어듭니다. τm이 크면 이전 입력의 흔적이 더 오래 남고, 작으면 빠르게 사라집니다. 동일한 연결망도 시간상수를 다르게 설정하면 가까운 시간에 몰린 자극에 반응하는 정도가 달라질 수 있습니다.
3. 숫자를 넣어 한 번 계산해 보기
설명용으로 EL=−65mV, 현재 V=−60mV, τm=20ms, RmI=15mV라고 가정하겠습니다. 오른쪽은 −5mV+15mV=10mV이므로 순간 변화율 dV/dt는 0.5mV/ms입니다. 1ms의 작은 간격으로 단순 오일러 근사를 하면 다음 전위는 약 −59.5mV가 됩니다. 이 수치들은 교육용 가정이며 특정 초파리 뉴런에서 측정한 값이 아닙니다.
여기서 0.5mV가 영원히 같은 속도로 더해지는 것은 아닙니다. V가 올라가면 누설 항의 크기도 변하기 때문입니다. 일정한 입력에서 발화를 무시한 평형은 V*=EL+RmI입니다. 이 평형이 발화 문턱보다 낮으면 단일 일정 입력만으로는 문턱을 넘지 못할 수 있습니다. 반대로 충분히 높으면 전위가 문턱에 도달해 발화와 리셋을 반복할 수 있습니다. 회로가 연결돼 있다는 사실과 실제 스파이크가 생긴다는 사실 사이에 이런 동역학이 들어갑니다.
4. 시냅스는 ‘연결 여부’ 이상의 규칙입니다
네트워크에서는 뉴런 i의 입력을 Ii(t)=Σjwijsj(t−dij)+Iext,i(t)처럼 표현할 수 있습니다. sj는 뉴런 j의 스파이크에 의해 생성되는 입력 파형, wij는 영향의 세기와 부호, dij는 전달 지연입니다. 파형을 순간적인 충격으로 둘 수도 있고, 짧게 상승한 뒤 지수적으로 감소하도록 둘 수도 있습니다. 표현 선택에 따라 모델의 시간 반응이 달라집니다.
연결 지도에서 센 접점 수 nij를 바탕으로 wij=g×nij×signj 같은 단순화를 생각할 수 있습니다. 여기서 g는 접점 수를 모델 입력 크기로 환산하는 계수이고 sign은 흥분·억제 부호입니다. 이는 설명을 위한 모형식이지, 모든 실제 연구가 동일한 공식을 쓴다는 말은 아닙니다. 수용체와 세포 유형별 차이를 생략했는지, 연결을 어느 수준에서 묶었는지를 원문에서 확인해야 합니다.
‘신경전달물질 이름을 알면 부호가 항상 정해진다’고 일반화하는 것도 조심해야 합니다. 전달물질의 효과는 수용체와 회로 문맥에 달려 있습니다. 모델에서 편의를 위해 한 부호를 배정했다면 그것은 명시해야 할 가정입니다. 생물학적 분류, 분류기의 예측, 계산 모델이 채택한 부호는 서로 다른 단계입니다.
5. 억제와 되먹임이 만드는 계산
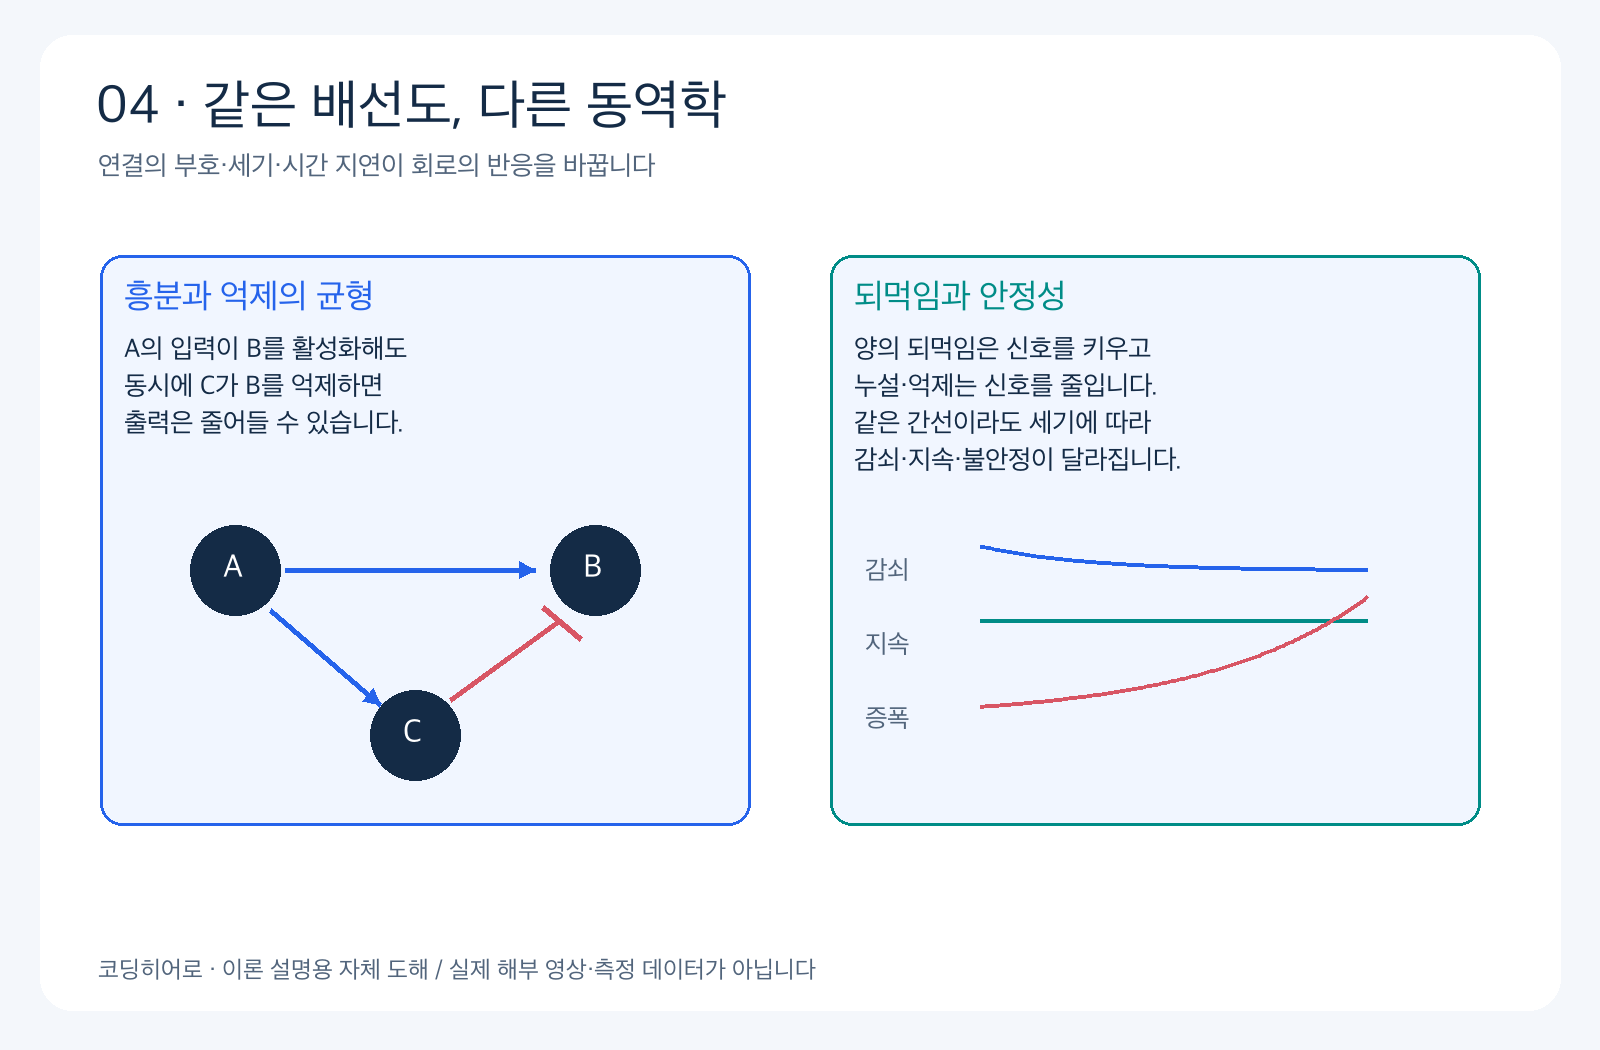
그림 2. 흥분·억제와 되먹임의 개념도. 선의 높이와 모양은 측정값이 아니며 서로 다른 동역학을 구분하기 위한 도식입니다.
A가 B를 흥분시키는 동시에 C를 활성화하고, C가 B를 억제하는 회로를 생각해 보겠습니다. A→B의 직접 경로가 빠르고 A→C→B의 억제 경로가 느리면 B가 잠깐 반응한 뒤 가라앉을 수 있습니다. 억제가 더 빠르거나 강하면 반응이 거의 사라질 수도 있습니다. 같은 세 개의 간선으로도 지연과 세기에 따라 전혀 다른 시간 패턴이 나오는 것입니다.
되먹임 회로에서는 자기 증폭과 안정성을 따로 살펴봐야 합니다. 가장 단순한 선형 근사 dx/dt=(W−I)x를 생각하면 행렬 W−I의 고유값 실수부가 모두 음수인 경우 작은 교란은 줄어듭니다. 어떤 모드의 실수부가 양수면 그 선형 근사에서는 교란이 커집니다. 이 식은 정규화된 시간상수를 가정한 교육용 모델이며, 실제 스파이킹 신경망은 문턱·리셋·포화·지연 때문에 훨씬 복잡합니다. 그래도 ‘배선 모양이 같아도 가중치에 따라 안정성이 달라진다’는 점을 잘 보여줍니다.
6. 거대한 모델은 무엇을 반복 계산하나요?
각 시간 단계에서:
  1) 감각 입력과 도착한 시냅스 입력을 모은다
  2) 각 뉴런의 막전위를 갱신한다
  3) 문턱을 넘은 뉴런의 스파이크를 기록한다
  4) 리셋·불응기 규칙을 적용한다
  5) 연결된 대상에 지연을 고려해 입력을 전달한다
  6) 관찰할 뉴런과 출력 집단의 상태를 저장한다
이 순서는 이해용 의사코드입니다. 실제 시뮬레이터는 이벤트 처리 방식, 적분기, 병렬화와 지연 버퍼에 따라 순서를 세분화합니다. 중요한 점은 계산량이 뉴런 수 하나로 정해지지 않는다는 것입니다. 시간 간격을 절반으로 줄이면 같은 생물학적 시간을 계산할 때 단계 수가 두 배가 됩니다. 시냅스 수, 발화 빈도, 연결 표현 방식, 기록할 변수의 양도 메모리와 실행 시간을 바꿉니다.
따라서 ‘노트북에서 실행된다’는 문장을 보면 생물학적 1초를 실제 몇 초에 계산했는지, 어떤 뉴런 모델을 썼는지, 몸의 물리 계산까지 포함했는지를 함께 봐야 합니다. 실행 가능한 모델이라는 사실과 생물학적 세부를 높은 정밀도로 보존했다는 사실은 별도의 축입니다.
7. 왜 연결 지도에 학습이나 기능 데이터까지 더하나요?
연결 구조를 고정해도 가중치, 시간상수, 입력 변환에는 여러 가능한 설정이 남습니다. 서로 다른 설정이 동일한 출력에 가까이 도달할 수도 있습니다. 이를 모델 식별의 문제로 이해할 수 있습니다. 관측값이 적으면 매개변수를 하나로 결정하기 어렵습니다. 그래서 연결 구조 외에 신경 활동 기록, 행동 과제, 세포 유형에 대한 지식을 추가 제약으로 사용합니다.
Lappalainen 등의 2024년 Nature 연구는 초파리 시각계의 연결에 제약을 받은 네트워크와 과제 기반 최적화를 결합해 신경 활동을 예측하는 접근을 보여줍니다. 연결 지도만으로 모든 세부를 완성한다는 방식과, 연결을 골격으로 두고 기능적 제약을 더한다는 방식은 구분해 읽어야 합니다. [2]
‘학습했다’는 말도 대상이 중요합니다. 뇌 모델의 가중치를 최적화했는지, 감각 입력을 변환하는 부호화기를 학습했는지, 몸의 관절을 움직이는 제어기를 학습했는지는 서로 다릅니다. 전체 시스템의 어느 부분이 데이터를 보고 조정됐는지 표시해야, 결과를 구조가 제공한 효과와 학습이 제공한 효과로 나눠 해석할 수 있습니다.
8. 좋은 검증은 보지 않은 조건을 예측합니다
모델을 만든 자료와 같은 조건만 잘 재현하면 과적합을 배제하기 어렵습니다. 더 설득력 있는 검증은 매개변수를 정할 때 사용하지 않은 자극, 다른 강도의 입력, 특정 뉴런을 억제한 상황에서 반응을 예측하는 것입니다. 신경 활동의 시간 파형, 발화율, 행동 결과를 나눠 비교하면 어디서 잘 맞고 어디서 실패하는지도 드러납니다.
대조군도 필요합니다. 연결을 무작위로 섞은 모델, 세포 유형 정보만 남긴 모델, 일부 경로를 제거한 모델을 같은 조건에서 비교하면 커넥톰의 세부 구조가 실제로 기여했는지 질문할 수 있습니다. 단, 무작위 대조군의 뉴런 수와 연결량까지 제멋대로 바뀌면 공정한 비교가 아닙니다. 무엇을 보존하고 무엇을 섞었는지를 정해야 합니다. 이것은 향후 평가를 위한 일반 원칙이며, 본문에서 새 실험을 수행한 결과는 아닙니다.
초파리 뇌 모델의 과학적 가치는 거대한 뉴런 숫자만으로 평가되지 않습니다. 어떤 가정을 썼고, 무엇을 예측했으며, 어떤 새로운 실험이 그 예측을 지지하거나 반박했는지가 중심입니다. 다음 편에서는 여기에 가상 몸과 환경을 연결했을 때 생기는 성취와 해석의 한계를 다룹니다.
원문과 더 읽을 자료
[1] Shiu 등, Nature — A Drosophila computational brain model reveals sensorimotor processing (2024)
[2] Lappalainen 등, Nature — Connectome-constrained networks predict neural activity across the fly visual system (2024)
[3] Lin 등, Nature — 전체 초파리 뇌 연결망의 통계 분석 (2024)
식의 기호와 수치 예시는 본문에서 정의한 교육용 표현입니다. 원 논문의 정확한 매개변수·통계·구현 재현에는 각 논문의 Methods와 공개 코드를 확인해야 합니다.
'AI 뉴스·업데이트' 카테고리의 다른 글
| Microsoft가 공개한 AI 행동규범 초안: 회사에서 AI를 쓸 때 확인할 세 가지 (0) | 2026.09.16 |
|---|---|
| 초파리 뇌가 게임하고 가상 몸을 움직인다? 뇌 업로드·폐루프 제어·의식의 경계를 따져보기 (0) | 2026.09.16 |
| 초파리 뇌 지도는 무엇을 밝혔나: 16만 6,700개 뉴런의 MaleCNS를 그래프 이론으로 읽기 (0) | 2026.09.16 |
| Claude for Financial Advisors 공개: 상담 준비부터 기록까지, 업무용 AI는 어떻게 연결될까 (0) | 2026.09.16 |
| ChatGPT Images 2.5 공개, 이제 그림 위에 그리며 수정을 설명합니다 (0) | 2026.09.14 |


댓글